Un animal que se mueve por el agua va dejando material biológico detrás: células de la piel que se desprenden, mucosidad, restos de heces, orina, escamas. En ese material hay fragmentos de su genoma. Filtrando unos litros de agua y secuenciando lo que queda en la membrana se puede saber qué vive ahí sin ver ni capturar nada.
La técnica lleva más de una década usándose en gestión de especies invasoras y en censos de fauna acuática, y en 2018 se aplicó a un lago escocés con fama de albergar algo grande. Aquella campaña es el ejemplo más citado, y también el más útil para entender lo que el método puede y no puede decir.
Lo que sigue es el procedimiento completo, de la botella al informe, con los límites de sensibilidad puestos donde corresponde: en medio, no al final, porque condicionan cada decisión del muestreo.
Lo que hace falta para un muestreo válido
- Puntos y profundidades: una sola muestra no vale; hacen falta decenas repartidas en superficie, media agua y fondo.
- Volumen: del orden de litros por muestra, filtrados en el momento, no horas después.
- Filtro: membrana de poro fino, en el entorno de la media micra, que retiene células y fragmentos.
- Controles: blancos de campo, blancos de filtrado y blancos de extracción en cada tanda.
- Marcadores: regiones cortas del genoma que sirven de código de barras taxonómico.
- Base de datos: sin secuencia de referencia, la identificación se queda en un rango taxonómico alto.
Qué deja un animal en el agua
El material que se busca no son animales ni células enteras necesariamente, sino fragmentos de ácido nucleico de longitud corta, a menudo de decenas o pocos centenares de bases. Proceden de células desprendidas de la epidermis y de las branquias, de mucosidad, de gametos y de restos digestivos.
La cantidad que libera un organismo depende de su tamaño, de su metabolismo, de si está activo o en reposo y de su fisiología. Un pez que respira bombeando agua por las branquias libera mucho más que un anfibio en letargo del mismo peso. Por eso la relación entre biomasa y señal genética no es directa, y cualquier estimación de abundancia a partir de esta técnica lleva un margen amplio.
Hay una consecuencia importante para el uso criptozoológico. Un solo ejemplar grande y esquivo, que además pasara la mayor parte del tiempo en profundidad, dejaría una señal muy débil y muy localizada. Eso no significa que sea indetectable, sino que el diseño del muestreo tendría que estar preparado para esa hipótesis desde el principio.
Cuánto dura ese rastro
El material genético en el agua se degrada, y la velocidad a la que lo hace es el segundo parámetro que decide el diseño. Los factores que lo destruyen son la actividad de enzimas microbianas, la radiación ultravioleta, la temperatura y la acidez.
En agua templada y expuesta al sol, la señal decae en cuestión de horas a pocos días. En agua fría, oscura y profunda, aguanta bastante más, y en sedimento puede conservarse durante años o mucho más, lo que abre una vía distinta: los testigos de sedimento permiten reconstruir qué había en un lago hace siglos.
Esa ventana corta es en realidad una ventaja para el uso que interesa aquí. Si la señal durase meses, no se podría distinguir entre un animal presente hoy y uno que pasó por ahí el año pasado. Al degradarse deprisa, un resultado positivo en agua indica presencia reciente en las inmediaciones.
El reverso es que también obliga a filtrar en el momento. Una muestra guardada en un bidón durante un día se degrada y además cambia de composición, porque las bacterias siguen multiplicándose dentro del recipiente.
El protocolo, paso a paso
- Diseño previo. Se fija sobre carta náutica una malla de estaciones que cubra orillas, cubetas profundas, desembocaduras y zonas de corriente, y se decide cuántas réplicas por estación.
- Descontaminación del material. Botellas, mangueras, bombas y embarcación se tratan con lejía diluida y se aclaran con agua libre de material genético entre estaciones.
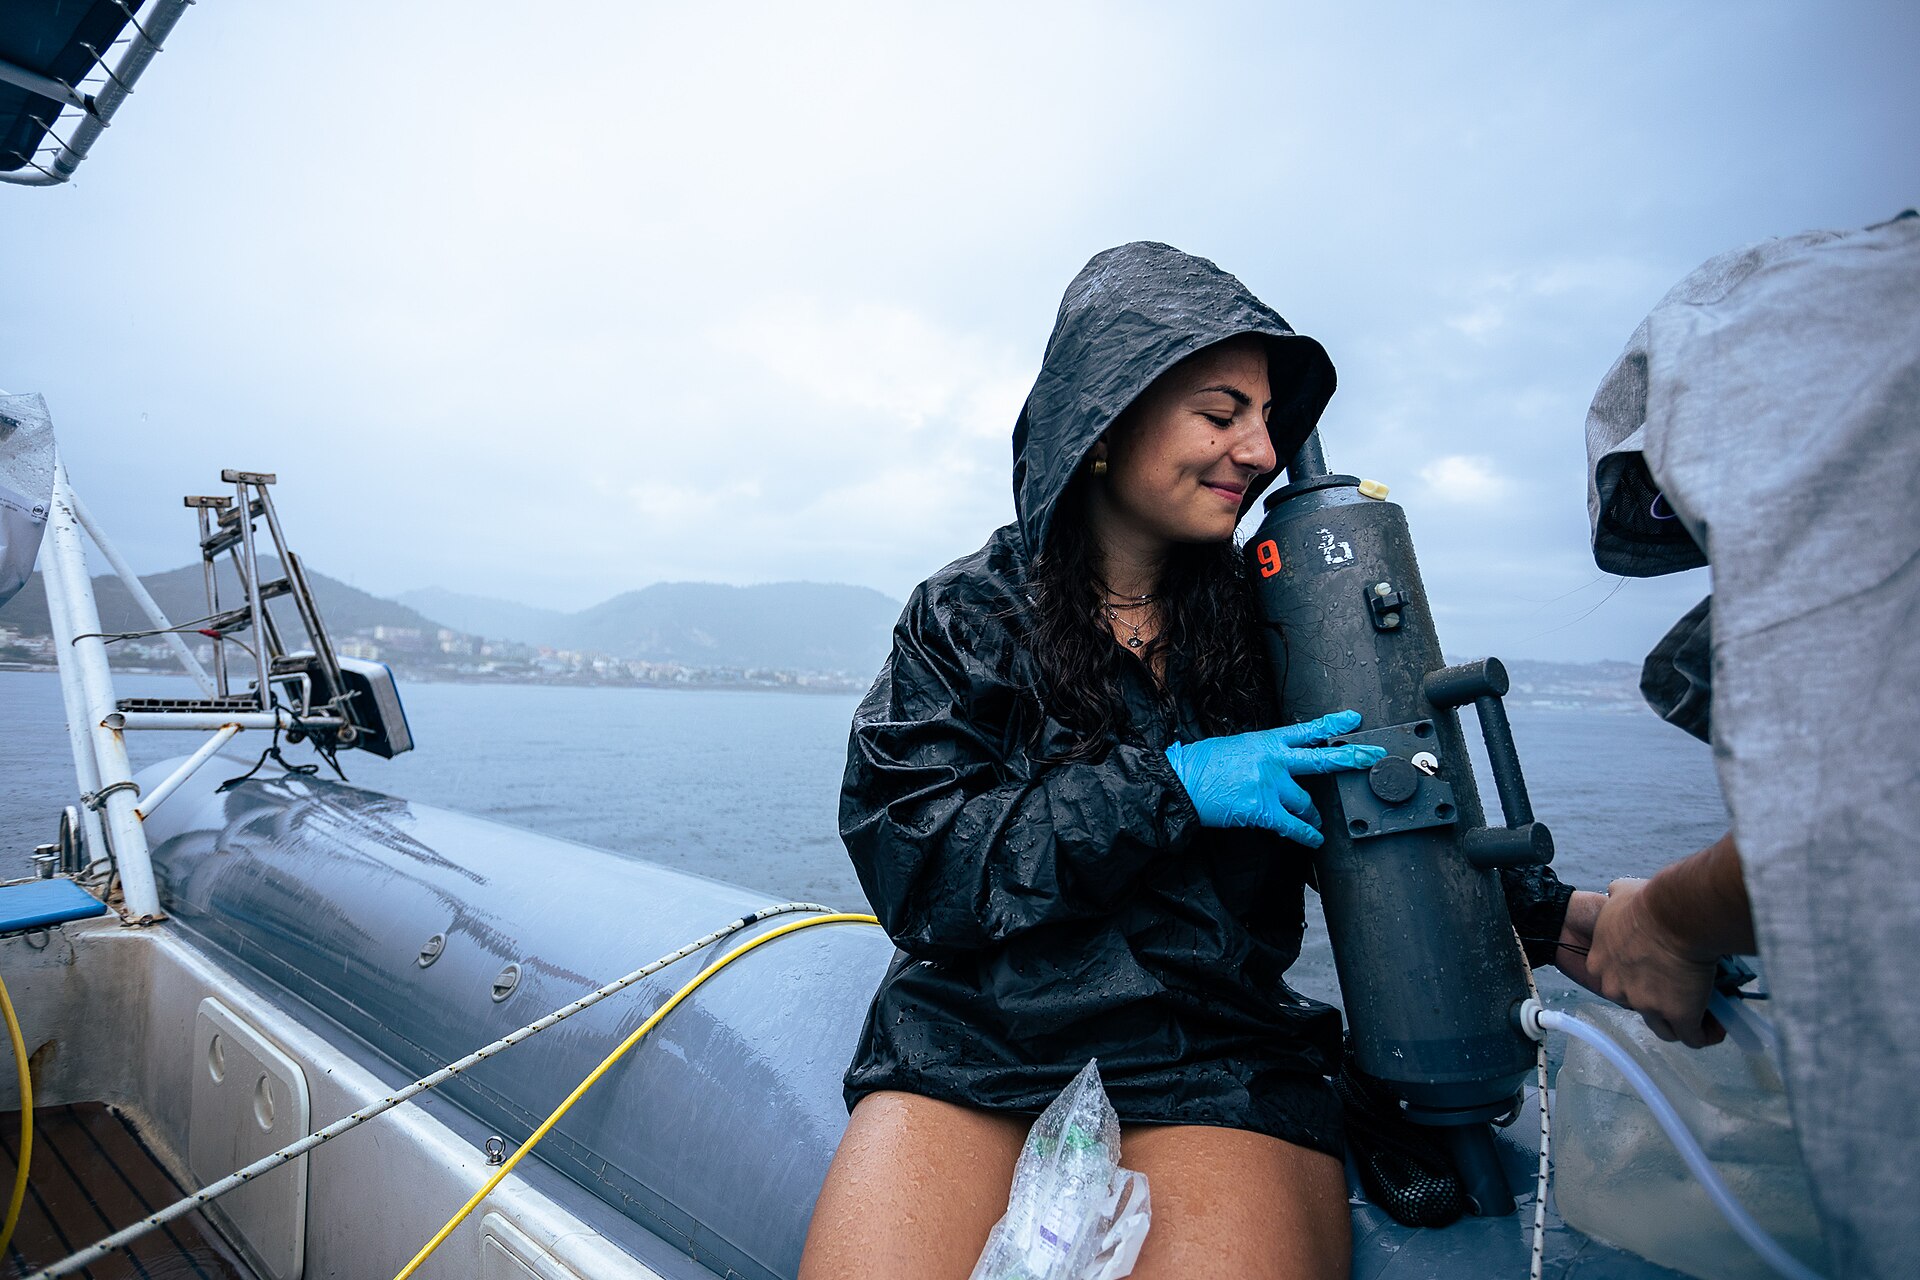
- Toma de la muestra. Se recoge el volumen previsto a la profundidad prevista, con botella de cierre remoto si hay que muestrear en el fondo, anotando coordenadas, hora, temperatura y profundidad.
- Blanco de campo. En cada jornada se procesa una botella de agua destilada exactamente igual que las demás, para detectar contaminación introducida por el equipo o por los operadores.
- Filtrado inmediato. El agua pasa por una membrana con bomba peristáltica o jeringa. El filtro es la muestra real; el agua que atraviesa se descarta.
- Conservación. El filtro se guarda en tampón estabilizador o se congela cuanto antes, y se transporta en frío con registro de temperatura.
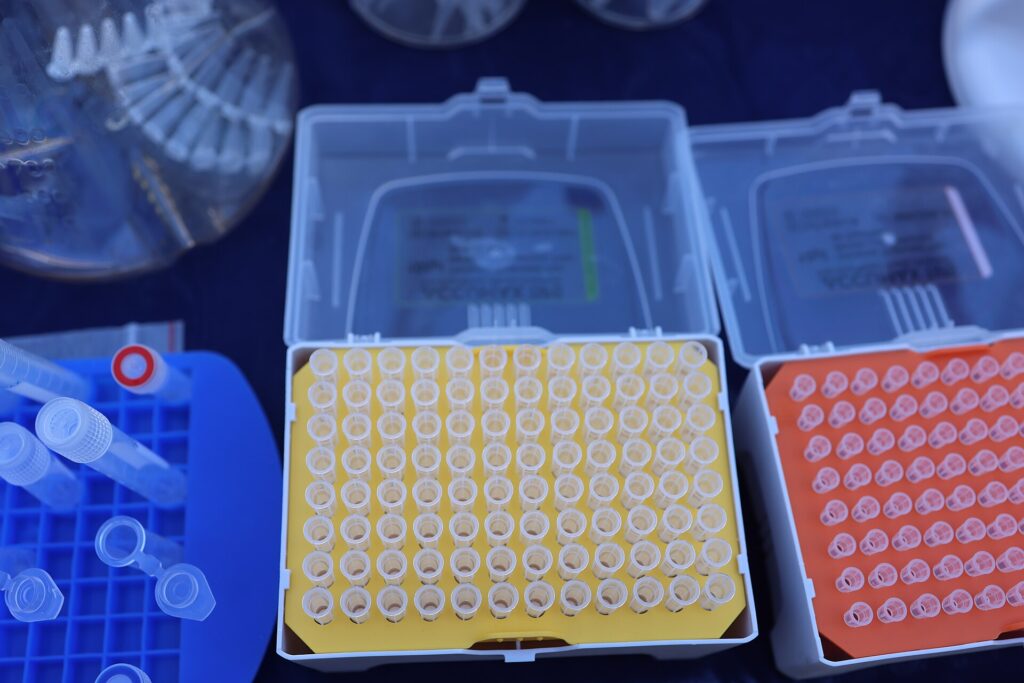
- Extracción en laboratorio. Se rompe el material retenido y se purifica el ácido nucleico, en una sala separada de la zona donde se manipulan productos amplificados.
- Amplificación. Se copian regiones marcadoras concretas mediante reacción en cadena. Para vertebrados se usan habitualmente fragmentos de genes mitocondriales.
- Secuenciación masiva. Se leen millones de fragmentos a la vez, lo que permite obtener el inventario completo de la muestra en lugar de buscar una sola especie.
- Asignación taxonómica. Cada lectura se compara con bases de datos públicas de secuencias de referencia y se asigna al nivel que permita el parecido.
- Filtrado estadístico. Se descartan lecturas con pocas repeticiones, se corrigen los arrastres entre muestras y se comprueba qué aparece también en los blancos.
- Publicación de datos crudos. Las lecturas se depositan en repositorios abiertos para que otro equipo pueda reanalizarlas con criterios distintos.
El paso que más resultados arruina es el segundo. Una manguera mal aclarada entre estaciones traslada señal de un punto a otro y produce positivos que parecen distribuciones y no lo son.
Qué puede y qué no puede detectar el adn ambiental
Conviene fijar la lista, porque en la discusión pública se le atribuyen capacidades que no tiene.
Puede detectar la presencia de una especie a partir de cantidades minúsculas de material, incluso cuando el animal es raro, nocturno o inaccesible. Puede producir un inventario completo de vertebrados de una masa de agua en una sola campaña. Puede detectar especies invasoras en fase temprana, cuando todavía no se ven. Y puede confirmar la persistencia de una población que se daba por perdida.
No puede, en cambio, decir cuántos individuos hay ni de qué tamaño son. No puede distinguir un animal vivo de restos recientes arrastrados por un río. No puede identificar una especie que no tenga secuencia de referencia depositada: en ese caso, la lectura se queda asignada a un género o a una familia, y ahí acaba la información. Y no puede probar ausencia, solo poner un techo a la probabilidad de presencia.
Esa última limitación es la que se maneja peor. Un resultado negativo se traduce en una afirmación estadística del tipo: si hubiera una población de tal tamaño en este lago, con este esfuerzo de muestreo la habríamos detectado con tal probabilidad. Cuanto mayor sea el esfuerzo, más apretada será esa afirmación, pero nunca llega a ser una negación absoluta.
El problema del volumen: kilómetros cúbicos de dilución
El lago escocés más citado en este contexto tiene una longitud de unos treinta y seis kilómetros, una profundidad máxima superior a los doscientos metros y un volumen que ronda los siete kilómetros cúbicos, el mayor de las islas británicas. Eso son miles de millones de metros cúbicos de agua.
Frente a esa cifra, una campaña que filtre unos centenares de litros está analizando una fracción minúscula del total. Lo que salva el planteamiento no es el volumen muestreado sino la mezcla: el agua de un lago circula, y la señal se reparte por corrientes internas, viento y estratificación estacional. Aun así, hay zonas mal comunicadas y periodos en los que la estratificación aísla el fondo de la superficie durante meses.
De ahí que el reparto de estaciones y el muestreo a varias profundidades pesen más que el volumen total filtrado. Cien litros bien distribuidos dicen más que mil litros tomados en el mismo sitio.
Hay un factor adicional en aguas oscuras como esta: la turba. El agua que llega de las cuencas turbosas arrastra ácidos húmicos que inhiben la reacción de amplificación y pueden generar falsos negativos si no se purifican bien. Es un problema técnico conocido y con solución, siempre que se sepa de antemano que va a aparecer.
Qué encontró el muestreo del lago escocés
La campaña se realizó en 2018 por un equipo con base en Nueva Zelanda, en colaboración con laboratorios de varios países, y los resultados se publicaron al año siguiente. Se tomaron alrededor de doscientas cincuenta muestras repartidas por el lago y a tres profundidades distintas, con controles de campo y de laboratorio.
El resultado fue un inventario amplio: varios miles de unidades taxonómicas, la inmensa mayoría bacterias y otros microorganismos, más el conjunto esperable de peces, aves, mamíferos terrestres del entorno, plantas y humanos. Es decir, funcionó: la técnica devolvió una fotografía coherente de la comunidad biológica de la cuenca.
Lo que no apareció fue material genético atribuible a reptiles. Tampoco a grandes escualos, ni a esturiones, ni a siluros, que eran los otros candidatos que se habían propuesto para explicar avistamientos de un animal grande. La hipótesis del reptil marino superviviente, que es la más popular desde los años treinta, quedó sin ningún respaldo por esta vía, en línea con lo que ya se sabía de la fotografía que sostuvo el caso durante décadas.
La anguila, y por qué no cierra el caso
El hallazgo que más recorrido tuvo fue la abundancia de secuencias de anguila, presentes en prácticamente todas las muestras y en todas las zonas del lago. Sobre esa base se planteó que los avistamientos podrían corresponder a anguilas de gran tamaño.
La hipótesis es razonable como punto de partida y tiene un problema serio. La técnica detecta la especie, no la talla. Una señal intensa de anguila es exactamente lo que se espera de una población numerosa de ejemplares normales, y no aporta nada sobre la existencia de individuos excepcionales.
Para valorar esa posibilidad hay que ir a otra fuente: las capturas históricas y los ejemplares medidos. Las tallas máximas verificadas de la especie europea están muy por debajo de lo que describen los relatos de avistamiento, y no existe ningún registro pesquero ni ningún ejemplar conservado que se acerque a esas dimensiones. La anguila explica una parte del inventario biológico; no explica un animal de varios metros.
El caso ilustra bien un patrón que se repite en este terreno: una técnica nueva resuelve la pregunta que se le hizo, y a continuación la discusión se desplaza a una pregunta que la técnica no puede responder. Es lo mismo que ocurrió con otras criaturas legendarias sometidas a examen.
Contaminación, inhibidores y falsos negativos
Los tres modos de fallo del método tienen firma propia y se pueden diagnosticar.
La contaminación produce positivos donde no debería haberlos, y se detecta porque aparece también en los blancos o porque muestra una distribución sin sentido ecológico. Las fuentes habituales son el material reutilizado sin descontaminar, el laboratorio donde ya se ha amplificado esa especie antes y, en muestreos de campo, la ropa y el calzado.
Los inhibidores producen falsos negativos silenciosos: la reacción no amplifica y la muestra parece vacía. Se controlan añadiendo una secuencia externa conocida y comprobando que se recupera; si no aparece, el problema es de química y no de biología.
Y están los falsos negativos por diseño: pocas réplicas, volumen escaso, profundidad equivocada o marcador que no cubre bien al grupo objetivo. Este es el más difícil de detectar porque no deja rastro en los controles, y solo se corrige calculando de antemano la potencia estadística del muestreo.
La base de datos decide lo que se puede nombrar
Este límite es conceptual y no se arregla con más muestras. La asignación taxonómica funciona por comparación: la lectura obtenida se coteja con secuencias de referencia depositadas por otros investigadores. Si la especie no está en la base, no hay con qué comparar.
Lo que ocurre entonces no es que el resultado se pierda, sino que se degrada. La lectura se asigna al nivel más bajo compatible, que puede ser el género, la familia o el orden, y queda registrada como secuencia no identificada dentro de ese grupo. En un inventario típico, una fracción apreciable de las lecturas acaba así.
Para un animal desconocido de un linaje conocido, ese es precisamente el escenario esperable: aparecería como una secuencia de vertebrado que no encaja con ninguna referencia, dentro de una familia determinada. Sería un resultado llamativo, no una prueba, y obligaría a repetir el muestreo con marcadores adicionales. Los repositorios internacionales, entre ellos la infraestructura mundial de información sobre biodiversidad, permiten comprobar qué cobertura de referencia existe para cada grupo antes de diseñar la campaña.
Qué significa exactamente un resultado negativo
| Resultado | Lectura correcta | Lectura incorrecta frecuente |
|---|---|---|
| Sin secuencias de reptil | Con este esfuerzo, una población de reptiles habría sido detectada con alta probabilidad | Está demostrado que no hay reptiles |
| Muchas secuencias de anguila | La especie es abundante en el lago | Existen anguilas gigantes |
| Secuencia sin asignar | Falta referencia para ese taxón | Se ha encontrado una especie nueva |
| Positivo en una sola réplica | Posible arrastre o contaminación; repetir | Presencia confirmada |
| Muestra sin amplificación | Comprobar inhibidores antes de concluir nada | No hay vida en ese punto |
La primera fila es la que resume el valor real de la campaña escocesa: no cerró la puerta por decreto, la cerró con una probabilidad alta y publicada.
Dónde sí ha funcionado, y qué enseña
Fuera del terreno criptozoológico la técnica tiene un historial sólido. Se usa de forma rutinaria para detectar especies invasoras en canales y puertos antes de que se establezcan, para localizar poblaciones residuales de anfibios amenazados, para censar peces migradores en ríos sin necesidad de trampas y para vigilancia sanitaria en aguas continentales.
También ha servido para reencontrar especies dadas por desaparecidas en un tramo concreto, confirmando presencia donde años de muestreo convencional no habían dado nada. Ese es el argumento más fuerte a su favor: es más sensible que la red y el electropesca en muchos escenarios.
La lección para quien quiera aplicarla a un caso de críptido es doble. Primero, que es una herramienta seria y accesible, no una curiosidad. Segundo, que solo produce conclusiones utilizables si el diseño se publica antes del muestreo, con el criterio de éxito y de fracaso fijado de antemano. Sin eso se repite el problema de siempre en este campo, que es discutir el resultado después de conocerlo, exactamente como ocurrió durante décadas con el animal que resultó existir de verdad.
Preguntas frecuentes
¿Cuánta agua hay que filtrar para que valga?
Depende del objetivo. Para inventarios generales bastan volúmenes de uno a unos pocos litros por réplica, con muchas réplicas. Para especies raras se aumenta el volumen y sobre todo el número de puntos. Lo determinante es la cobertura espacial, no el litraje total.
¿Se puede hacer con material casero?
La toma y el filtrado sí, con jeringa y membranas comerciales, y hay programas de ciencia ciudadana que funcionan así. La extracción y la secuenciación exigen laboratorio, y el control de contaminación es lo que separa un dato utilizable de un dato inservible.
¿Detectaría un animal muy grande pero muy escaso?
Depende del diseño. Un único ejemplar en un lago enorme daría una señal débil, dispersa y probablemente por debajo del umbral de detección de una campaña estándar. Un muestreo pensado para esa hipótesis, con más réplicas y muestreo profundo dirigido, tendría bastantes más opciones.
¿Por qué aparecen secuencias humanas en todas las muestras?
Porque hay presencia humana en la cuenca y porque el propio equipo de muestreo la aporta. Es tan sistemático que se usa como control interno: si no aparece material humano en una muestra manipulada, algo ha fallado en la extracción.
¿Puede confundirse una especie con otra próxima?
Sí, si el marcador elegido es poco variable dentro del grupo. Por eso se combinan varios marcadores y se comprueba la resolución taxonómica esperada antes de la campaña. Instituciones con colecciones de referencia, como los grandes museos de historia natural, son la fuente última de esas secuencias.
¿Se ha aplicado a otros lagos con leyenda?
Se han hecho campañas en varios lagos con fama de albergar criaturas, con resultados equivalentes: inventarios coherentes de fauna local y ninguna secuencia atribuible a un animal desconocido de gran tamaño. Ninguna de esas campañas ha tenido la cobertura de la escocesa, así que sus conclusiones son proporcionalmente más débiles.